
SCIENCE ADVANCES · RESEARCH HIGHLIGHT
Science Advances |慈鲷性别决定新机制研究成果解读
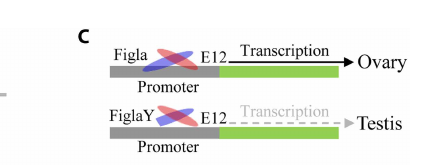
机制示意:FIGLAY通过拮抗FIGLA/E12介导的转录激活,抑制卵巢分化并促进精巢发育(据论文Figure 5C)
转座子驱动“雌性基因”演化为雄性性别决定基因
近日,国际学术期刊Science Advances发表题为“Transposons drove the evolution of a male sex-determining gene from a female gene with deep introgression across cichlids”的研究论文。研究团队在莫桑比克罗非鱼(Oreochromis mossambicus)中发现并功能验证了一个此前未知的雄性主效性别决定基因figlaY。研究进一步揭示,一个原本与雌性分化相关的基因,可在转座元件驱动的复制、易位、截短和调控重塑后,获得决定雄性发育的新功能,并通过基因渐渗在多个慈鲷类群中传播。本文三位共同第一作者为淡马锡生命科学研究所的王乐、孙飞,以及华南农业大学海洋学院的杨子拓,通讯作者位淡马锡生命科学研究所岳根华教授。
最关键的发现:一个“雌性相关基因”的复制版本,最终进化成了雄性性别决定开关。 |
01 从“雌性基因”到“雄性开关”:性别决定基因还能这样进化?
脊椎动物的性别决定机制高度多样,尤其在鱼类中,即使亲缘关系非常接近的物种,也可能采用完全不同的性别决定系统。与这种多样性相比,目前已明确的脊椎动物主效性别决定基因数量仍然有限,许多已知基因反复来自少数经典通路。
本研究提出并验证了一条此前未被认识的路径:经典雌性相关转录因子figla的复制基因在进化过程中发生结构与调控重塑,形成Y染色体特异的figlaY,并进一步获得雄性主效性别决定功能。论文将这一过程形象地概括为从雌性分化通路向雄性决定通路的“genetic defection”。
02 锁定Y染色体上的关键候选基因:figlaY
为了寻找LG1上的真正性别决定基因,研究团队首先对莫桑比克罗非鱼XX雌鱼和YY雄鱼进行了高质量基因组测序与组装,并结合遗传连锁图谱、QTL定位以及大规模群体精细定位,将性别决定区域逐步缩小。
在Y染色体性别决定区域中,研究人员发现了一个约26 kb的雄性特异性插入片段,该区域相较X染色体多出一个基因。该基因是雌性相关转录因子figla的同源复制基因,因此被命名为figlaY。
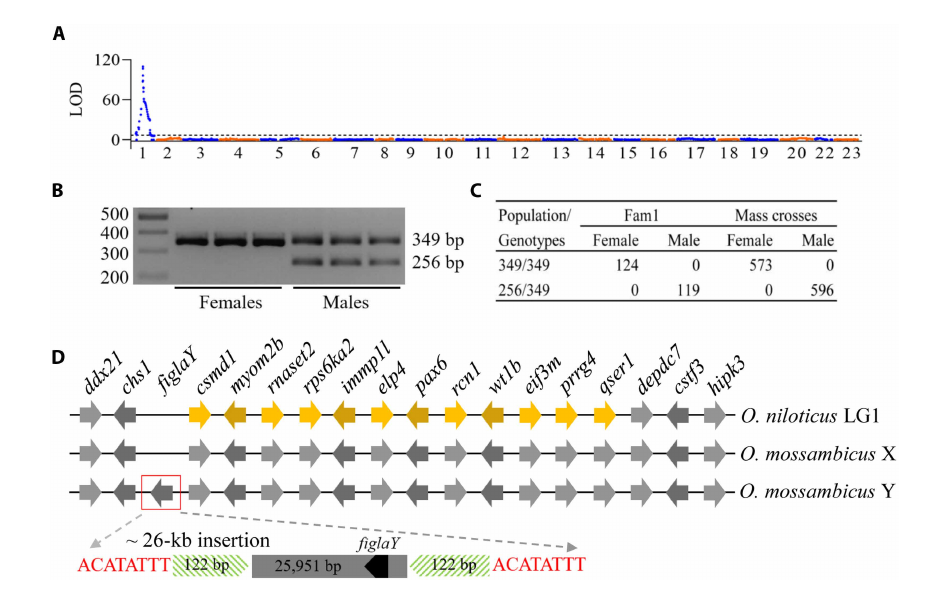
图1 LG1性别决定区域定位及Y染色体特异性figlaY插入片段(论文Figure 1核心内容)
表达分析进一步显示,在性腺分化关键时期,figlaY是候选区域18个基因中表现出最明显雄性偏向表达的基因;组织表达和原位杂交结果也显示,figlaY主要在雄性性腺中表达,并定位于生殖细胞周围的支持性体细胞。
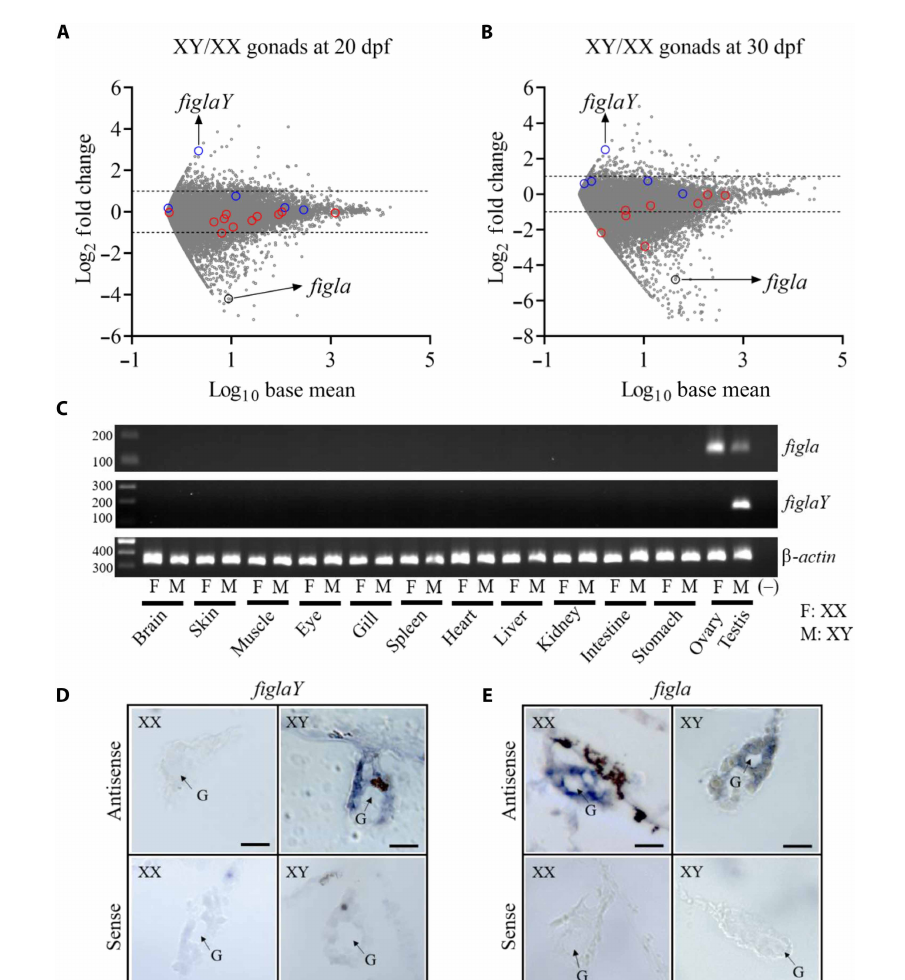
图2 figlaY在性别决定关键时期呈明显雄性偏向表达(论文Figure 2)
03 “敲掉它,XY雄鱼变成雌鱼”:直接证明figlaY决定雄性命运
仅有雄性特异表达,还不足以证明一个基因就是“性别决定开关”。研究团队进一步利用CRISPR-Cas9基因编辑技术,对XY遗传型莫桑比克罗非鱼的figlaY进行了功能敲除。
结果非常清晰:在G1代XY个体中,所有携带figlaY移码突变的个体(n=17)均发育为具有正常卵巢的雌鱼;而携带非移码突变的XY个体(n=29)仍发育为具有正常精巢的雄鱼。
遗传型仍是XY,但当figlaY失去功能时,性腺发育方向由“雄”转“雌”。 |
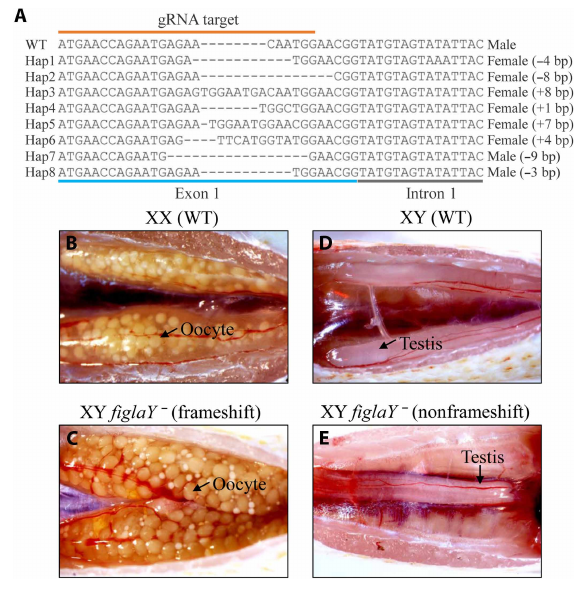
图3 CRISPR-Cas9敲除figlaY导致XY个体发生雌性发育(论文Figure 3)
这一功能缺失实验直接证明:figlaY对于莫桑比克罗非鱼雄性发育是必需的,是LG1性别决定系统中的主效雄性性别决定基因。
04 转座元件成为“进化工程师”:一步步重塑figlaY
更值得关注的问题是:figlaY究竟是如何从一个雌性相关基因,演化成雄性性别决定基因的?研究发现,figlaY所在约26 kb插入区域高度富集重复序列,其中超过62%的序列来源于转座元件。
进一步分析表明,转座元件并非只是“恰好存在”于figlaY周围,而是深度参与了这个新基因的形成过程:它们可能参与祖先figla基因的复制和易位,并为figlaY贡献新的编码序列、终止密码子和3′非翻译区;与此同时,转座元件来源序列还参与形成新的启动子和增强子调控元件,从而重新塑造了figlaY的表达模式。
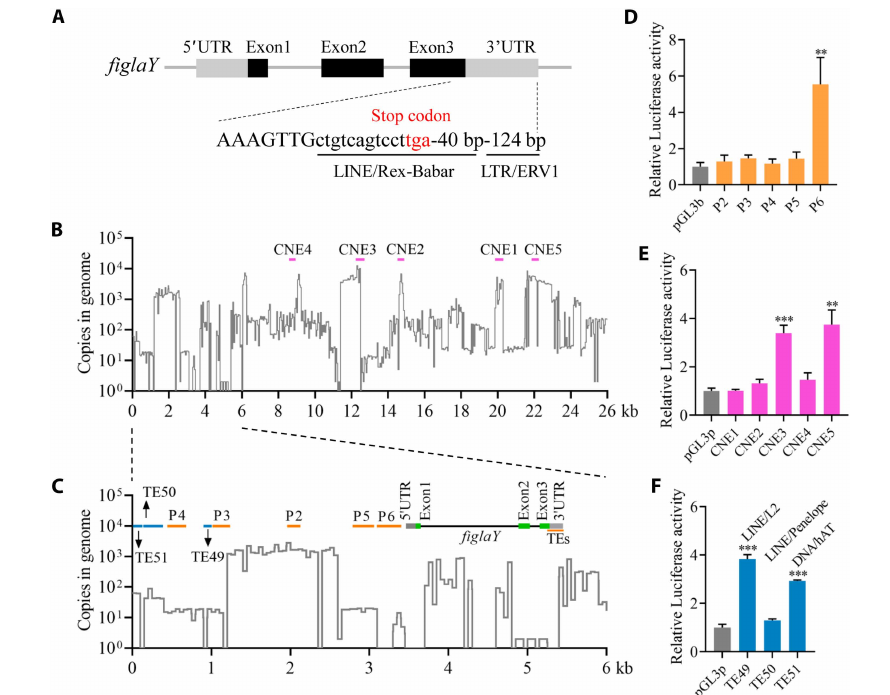
图4 转座元件参与figlaY的结构形成与调控元件重塑(论文Figure 4)
功能实验显示,figlaY附近多个候选调控元件具有显著的启动子或增强子活性,其中包括来源于LINE/L2和DNA/hAT等转座元件家族的序列。由此,转座元件在这里更像一名“进化工程师”:推动基因复制与搬迁,并不断改造其结构和调控方式,为新性别决定基因的产生提供分子基础。
05 FIGLAY如何实现“由雌转雄”?——通过拮抗FIGLA抑制卵巢分化
figlaY与原始figla虽然具有共同来源,但二者的蛋白结构已经明显分化。FIGLA具有DNA结合结构域和HLH结构域,可与转录因子E12形成异源二聚体并调控下游靶基因;FIGLAY则保留了参与蛋白互作的HLH结构域,却失去了FIGLA原有的基本DNA结合结构域。
研究据此提出“显性负调控”机制:正常情况下,FIGLA与E12形成复合物并促进卵巢相关转录;而FIGLAY可以竞争性结合E12,形成DNA结合能力不足的复合物,从而削弱FIGLA/E12对下游基因的激活,抑制卵巢分化并推动精巢发育。
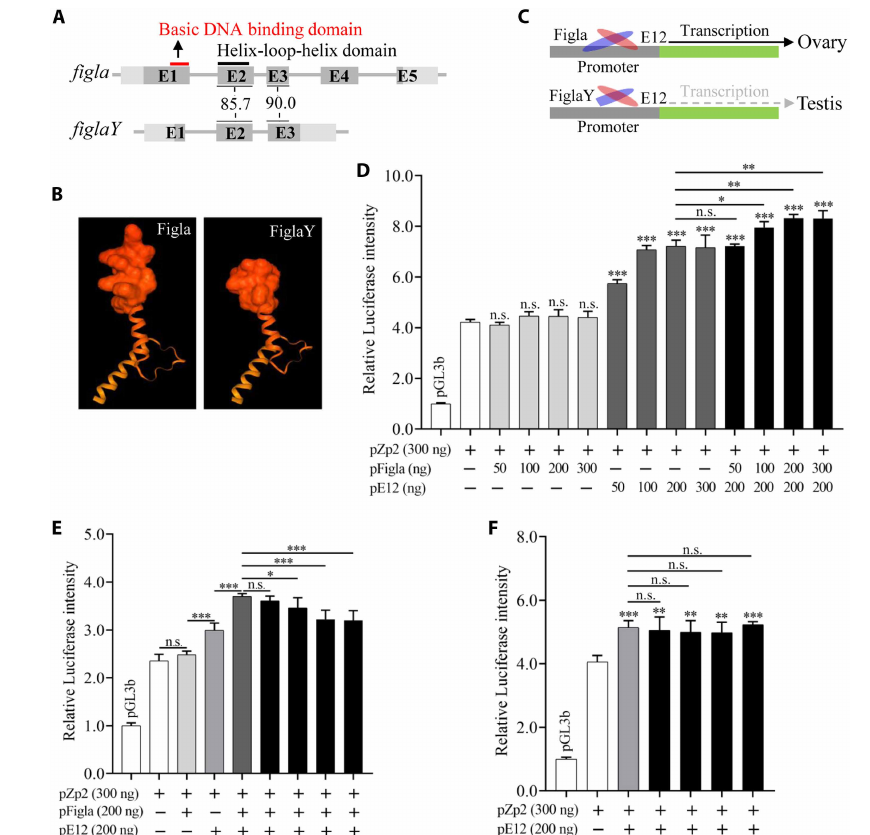
图5 FIGLAY拮抗FIGLA/E12介导的zp2启动子激活,揭示其显性负调控机制(论文Figure 5)
荧光素酶报告实验进一步支持了这一模型:FIGLA与E12共同表达能够增强zp2启动子活性,而加入FIGLAY后,FIGLA/E12诱导的启动子活性显著下降;与此同时,FIGLAY对E12单独产生的激活作用并无明显影响。
figlaY并非简单“开启一个新的雄性程序”,而是通过削弱雌性分化程序,使性腺发育转向雄性。 |
06 一个性别决定基因,为什么会出现在如此多的慈鲷中?
研究团队进一步将视角从莫桑比克罗非鱼扩展到整个慈鲷科。通过系统搜索现有基因组资源并进行系统发育分析,研究人员在11种罗非鱼、39种坦噶尼喀湖慈鲷以及较为古老的非洲慈鲷Etia nguti等类群中发现了figlaY/figla-like同源序列。
在具有雌雄基因组信息的35种坦噶尼喀湖慈鲷中,有32种(91.4%)的figla-like同源序列仅出现在雄性基因组中,显示出强烈的雄性特异性。结合系统发育关系、物种分布及基因组结构证据,研究团队认为figlaY很可能在一个较为古老的非洲慈鲷祖先类群中起源,随后通过基因渐渗跨越物种边界,进入多个不同的慈鲷谱系。
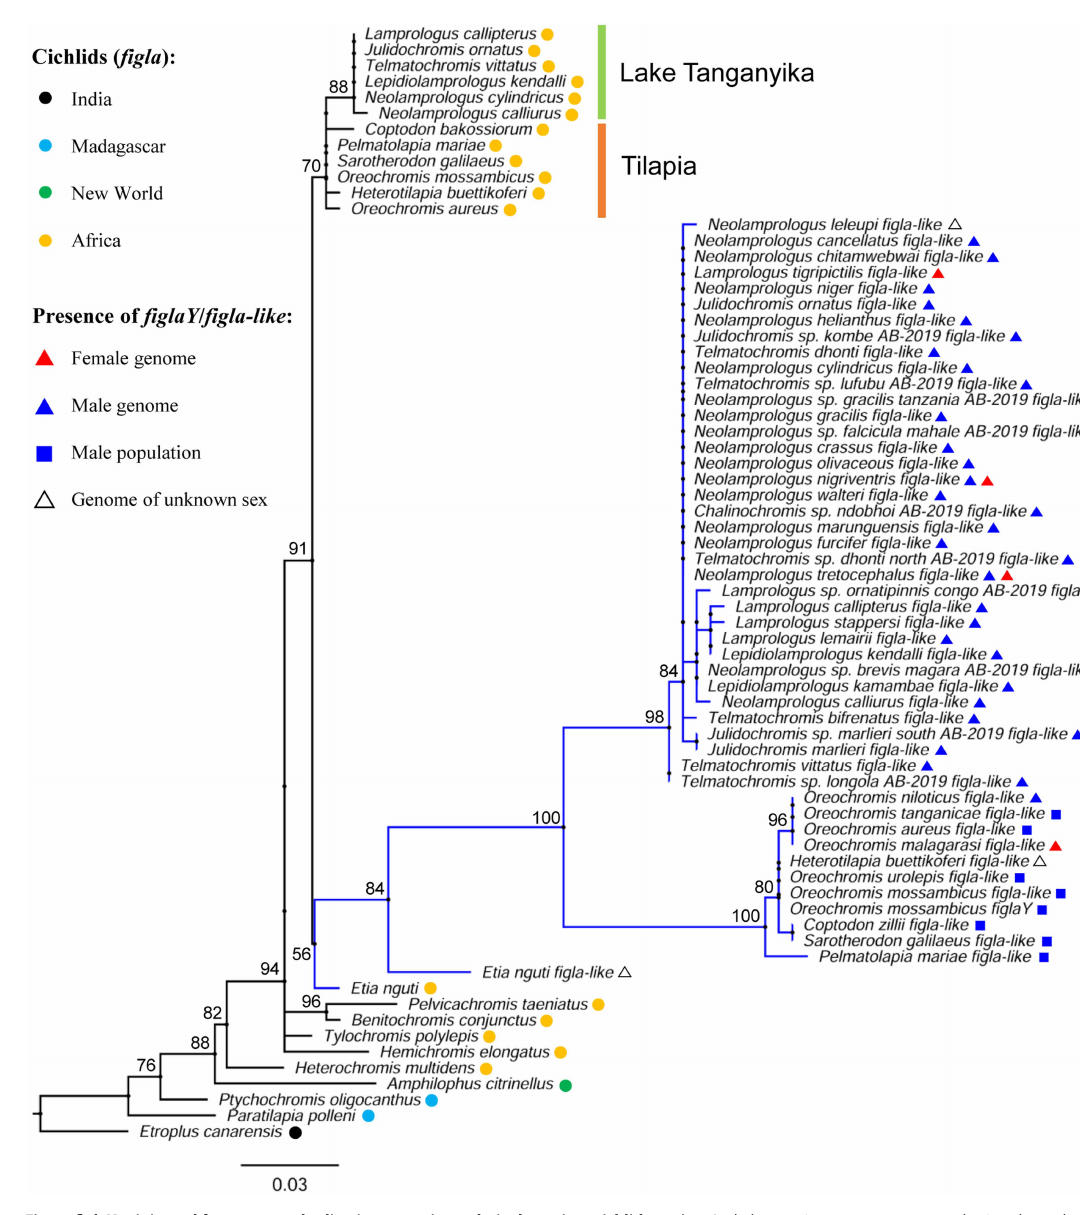
图6 figlaY/figla-like在慈鲷中的系统发育分布,支持其古老起源及跨谱系渐渗(论文Figure 6)
07 研究意义:拓展脊椎动物性别决定的“进化工具箱”
这项研究构建出一条完整而罕见的性别决定基因进化路径:雌性相关基因figla →基因复制与易位 → 转座元件参与结构与调控重塑 → 形成Y连锁截短基因figlaY → FIGLAY拮抗FIGLA介导的卵巢分化 → 获得雄性主效性别决定功能 → 通过基因渐渗进入多个慈鲷谱系。
这一发现表明,新的性别决定基因并不一定只能从传统“雄性相关基因”中产生。进化可以重新利用一个原本位于雌性分化通路中的基因,通过复制、结构变异和调控网络重构,使其获得完全相反的生物学功能。研究因此拓展了我们对性别决定网络可塑性、性染色体演化、转座元件驱动基因创新以及物种间基因渐渗的认识。
罗非鱼也是全球重要养殖鱼类,性别决定与性别控制一直是遗传育种的重要基础问题。对figlaY的鉴定和机制解析,为理解慈鲷性别系统的快速演化提供了新的理论框架,也为后续开展罗非鱼性别控制、种质创新与遗传育种研究提供了新的候选靶点和基础资料。
论文信息 题目:Transposons drove the evolution of a male sex-determining gene from a female gene with deep introgression across cichlids 作者:Le Wang†, Fei Sun†, Zituo Yang†, May Lee, Joey Wong, Shadame Yeo, Yanfei Wen, Axel Meyer*, Francesc Piferrer*, Manfred Schartl*, Gen Hua Yue* 期刊:Science Advances 发表时间:2026年6月3日 DOI:10.1126/sciadv.aed6242 |
